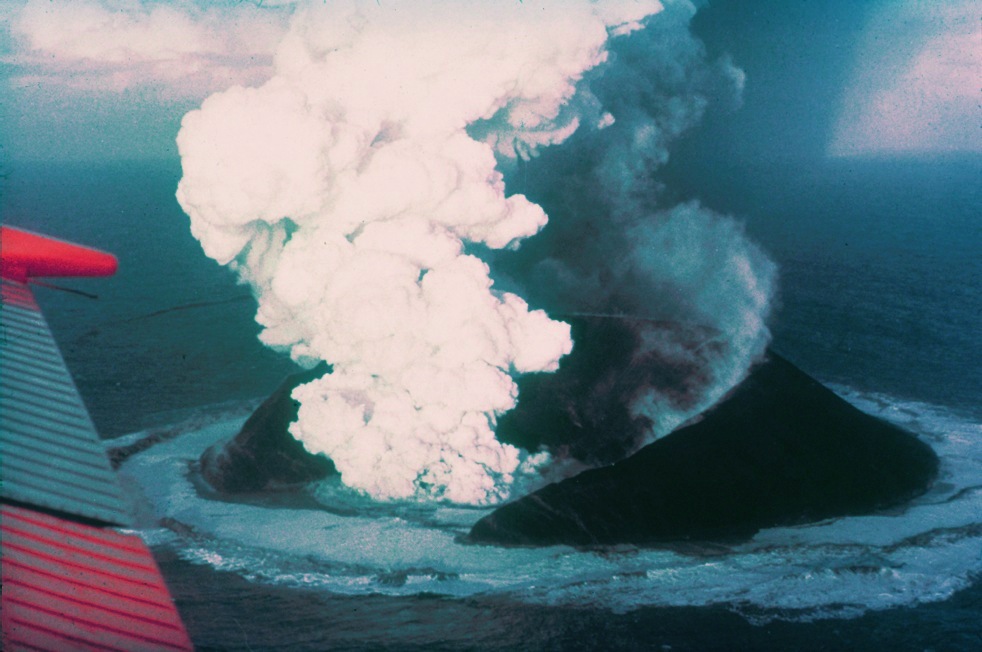
 El 14 de noviembre de 1963 las deposiciones de diferentes erupciones volcánicas rebasaron el nivel del mar, creando la isla de Surtsey. Esta isla, declarada reserva de la biología 2 años después y patrimonio de la humanidad en 2008, constituye un verdadero laboratorio al aire libre en el que los pocos científicos que tienen permiso para desplazarse hasta ella, pueden estudiar la sucesión ecológica, es decir, cómo la vida coloniza un terreno completamente estéril. Un campo extremadamente interesante del que algún día escribiré una entrada. Pero hoy toca hablar de una isla más grande.
Surtsey se encuentra situada al suroeste de Islandia; de hecho, es su punto más meridional. Curiosamente Islandia también representa un «laboratorio» natural en el que se llevan a cabo numerosas investigaciones sobre... genética. Islandia empezó a ser habitada hace unos 1.000 años, por poblaciones vikingas originarias de Escandinavia y las islas británicas. Casi desde su establecimiento se tiene un registro de las bodas y bautizos, lo que nos informa sobre las relaciones de parentesco que existen entre los habitantes actuales de la isla. Sólo han pasado 35 generaciones desde los primeros colonos. Durante estas 35 generaciones la aportación genética desde el exterior ha sido ínfima. Una población de estas características (prácticamente aislada, procedente del cruce de un puñado colonos originarios) permite el estudio de diferentes marcadores genéticos que sirven para corroborar hipótesis genéticas (referentes al efecto fundador o a la deriva genética). También permite estudiar caracteres que, debido a la consanguinidad, se encuentran en mayor proporción en sus habitantes. En este sentido, cabe destacar el proyecto de la compañía deCODE genetics, Inc, la cual realiza una base de datos del DNA de los islandeses.
 Recientemente PLoS Genetics ha publicado un nuevo artículo de acceso libre sobre la genética islandesa. Leyendo el artículo podemos enterarnos que gracias a los estudios genéticos anteriores se cree que de todas las madres "originales" de los islandeses, un 40% eran escandinavas, el resto procedían de las islas británicas. En cambio, de los padres fundadores, un 80% eran escandinavos. ¿Cómo podemos discriminar entre padres y madres? Para el estudio de los padres se analiza la secuencia de los cromosomas Y (exclusivos de los hombres); para las madres, se analiza el DNA mitocondrial. Las mitocondrias, como ya sabréis, son las centrales energéticas de nuestras células. Las mitocondrias son bacterias simbióticas que conservan aún su DNA (que ya es nuestro). Los espermatozoides sólo contribuyen con el material genético del núcleo celular: no transmiten mitocondrias. Por lo tanto, las mitocondrias de todos nosotros proceden exclusivamente de las de nuestras madres. Por eso se estudia el material genético de estos orgánulos como marcadores de la línea materna.
 En el artículo mencionado (una colaboración entre investigadores de Barcelona, Leiden y, evidentemente, Reykjavik) se han analizado las secuencias del DNA mitocondrial de 68 esqueletos de 1000 años de antigüedad, comparándolas con las poblaciones actuales. Curiosamente, su secuencia era más parecida a la de las poblaciones de las que procedían (Escandinavia e islas británicas) que a la secuencia de sus descendientes, los islandeses actuales. Según los autores, este hecho sería debido a la influencia de la deriva genética. La deriva genética es un proceso que actúa, junto con otros como la selección o las mutaciones, durante la evolución de las especies.
Todos nosotros tenemos dos copias de cada gen, llamadas alelos. Nuestros gametos (óvulos y espermatozoides) sólo tienen un alelo de cada gen (así cuando forman un nuevo individuo, éste volverá a tener 2 alelos). De nuestros gametos, la mitad tiene uno de los alelos, y la otra mitad, el otro. Por tanto, el nuevo individuo sólo llevará uno de nuestros alelos. ¿Cuál? Aquí, casi siempre, interviene el azar. Y este azar es el que genera la deriva genética. En esta imagen animada de Wikipedia (by profesor marginalia) podemos ver el funcionamiento de esta deriva genética en un tarro con bolas de dos colores (que representan los dos alelos de un gen). Por azar se escogen 20 de esas bolas para el siguiente jarro. En cinco generaciones uno de los dos alelos se habrá perdido (Os recomiendo la entrada de la wikipedia en inglés para profundizar en este concepto).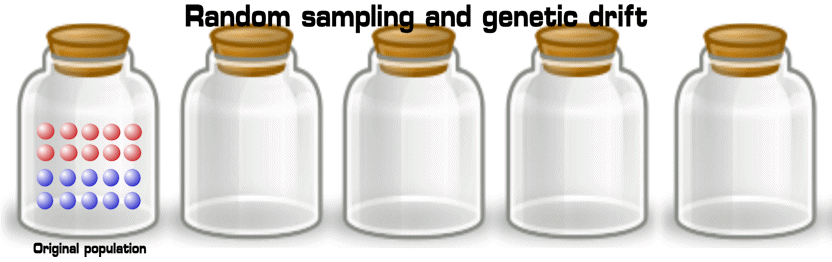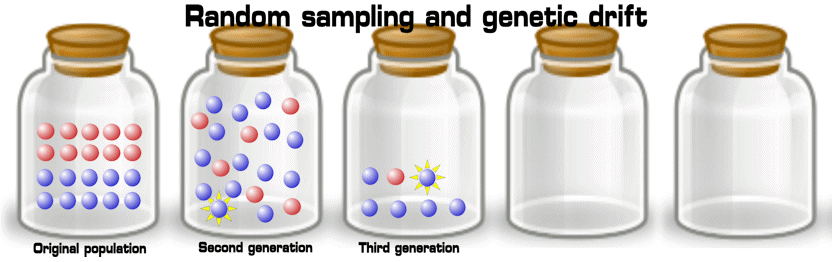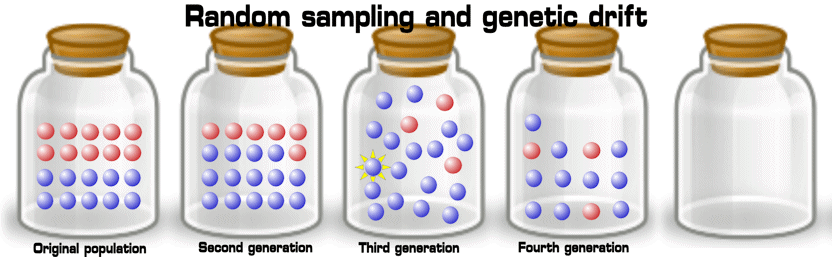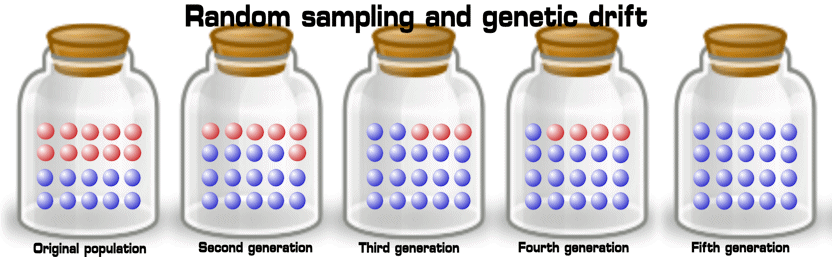
La importancia de la deriva genética es mayor cuanto menor es el tamaño de la población de estudio. Así, las poblaciones originarias de los esqueletos (Escandinavia e islas británicas) son mucho mayores que las que se establecieron en la isla. Por eso, el DNA mitocondrial de los islandeses se ha «modificado» más que el de escandinavos o británicos, presentando así más diferencias respecto a sus fundadores que éstos.
Images: Wikimedia commons. 1. Surtsey; 2. Jon Olaffson; 3. Thorstein Gislason; 4. Casas con tejado de hierba (Skógar)
21/4/09
Huesos de vikingos a la deriva

30/1/09
FoxP2. X. La vía molecular
La vía molecular
A pesar que FoxP2 se descubrió en pulmón (parece que haga siglos, pero fue el 2001), su rápida implicación en el lenguaje copó todos los estudios relacionados con él. O casi todos. Una pequeña aldea de Pennsylvania se resistía a la corriente general y publicaron este artículo en el que se demuestra el papel de FoxP2 en el desarrollo de pulmón y esófago... parece pues que FoxP2 no es exclusivo de cerebro, dato que suele obviarse en todos los artículos de "ciencia" de los medios que hablan de él.  Seguramente debido a la implicación de la proteína FoxP2 en múltiples procesos, los ratones que no presentan ninguna copia de este gen (ni por parte de la madre, ni del padre) no llegan a nacer. ¿Cómo hacer para estudiar la falta de este gen? Una posibilidad es la desarrollada en este artículo en el que se generan ratones mutantes condicionales para la falta de FoxP2. En estos ratones el gen para la FoxP2 está flanqueado por secuencias Lox. Estas secuencias son reconocidas por una enzima llamada recombinasa Cre, eliminando el gen FoxP2 (si queréis saber un poco más cómo funciona este mecanismo, os recomiendo esta antigua entrada). Como somos capaces de controlar cuándo y dónde se expresa esta recombinasa Cre, podemos tener un ratón normal en el que en algún momento y lugar deja de haber FoxP2. Si os fijáis es parecido al caso de los pájaros interferidos del que hablamos hace un par de entradas.
Otra ruta investigadora que está floreciendo es el de las distintas formas de FoxP2. Como hemos comentado hace unas entradas (en "La perspectiva humana"), la combinación de los distintos exones del gen (las partes que se leen) genera diferentes proteínas FoxP2. Pero, como empieza a ser habitual para un gran número de genes, a esta variabilidad combnatoria de los exones (por splicing alternativo) hay que añadirla una funte nueva de "diversidad" proteica: los diferentes sitios donde se empieza a transcribir el gen. Es como si Una frase tuviese Diferentes mayúsculas señalando el inicio de la lectura. Podrías empezar a leer desde cualquiera de esas mayúsculas, pero entonces la frase variaría de significado.
Desde el principio de su descubrimiento se sabe que FoxP2 es un factor de transcripción. Los factores de transcripción se unen al DNA de las secuencias reguladoras de otros genes y determinan cuándo, cómo, dónde y en qué cantidad se expresarán. Si FoxP2 es uno de estos factores, ¿qué genes controla? Diferentes artículos han intentado responder a esta casi inabarcable cuestión (por ejemplo, éste o éste). Con los datos de éstos y otros artículos se han empezado a describir los genes que podrían estar implicados en el lenguaje (pensadlo así, si FoxP2 tiene algo que ver con el lenguaje y su función es controlar la expresión de estos "nuevos" genes, algunos de ellos tendrán algo que decir con respecto al habla, ¿no creéis?). Esta creciente red de genes putativos del habla empiezan a conformar lo que se ha denominado ellexinoma. La mera existencia del lexinoma ya contradice plenamente la idea de que FoxP2 es el gen del habla... pero en demasiadas ocasiones se le sigue denominando así.
Y acabamos ya. No os voy a dar más la tabarra con el FoxP2. Lo que empezó siendo una entrada corta se me ha convertido en una Serie Divulgativa de pleno derecho... espero no haberos aburrido. El fin último de toda esta parrafada inacabable era intentar dejar claro que la identificación del gen FoxP2 como "el gen del habla" es una tontería amplificada por los medios de comunicación. El habla y el lenguaje son características y habilidades extremadamente complejas que no pueden circunscribirse a la acción de una sola proteína. Además, esta proteína (como casi todas) también se encuentra, con variaciones, en el resto de los vertebrados. Y, por si faltasen evidencias, no es única del cerebro, también se expresa en pulmones y esófago (entre otros), controlando su desarrollo. En fin, como muy bien explicó Quim en El gen de los ojos verdes, no hay un gen para cada una de nuestras características. Por mucho que venda titulares, o consiga publicaciones y financiación, el afirmarlo.
Como colofón, recomendaros esta recopilación hecha por un experto en la materia, A. Benítez-Burraco, publicada en castellano en La Revista de Neurología (en dos partes: [1] y [2].
Hablamos... jejeje, no he podido evitarlo. Tendré el FoxP2 demasiado activado. O inactivado. ¡Qué se yo!
22/1/09
FoxP2. VIII. La vía animal
La vía animal.
Los primeros pasos en esta vía los dieron los investigadores de las aves cantoras (¿recordáis?), y se siguió con estudios de comparación de secuencia de este gen en diferentes mamíferos, con conclusiones más que discutibles (comentado ya aquí). En el simposio sobre FoxP2 celebrado en 2006 (resumido en este artículo), esta vía tenía un gran peso específico, como se deduce del título del artículo-resumen: "Ratones cantantes, pájaros cantores, y otros: modelos de la función y disfunción de FoxP2 en el habla y el lenguaje humanos". De este artículo me ha llamado la atención que cada autor firma un subapartado, práctica no demasiado común en lo artículos científicos.
¿Qué pueden ser los otros del título? ¡Ah! ¡Cabe de todo! Desde murciélagos ecolocalizadores en los que también se estudian la "aceleración" de la evolución de su FoxP2 hasta monos, en los que se analiza la expresión de FoxP2 y FoxP1, entre otros genes, en su cerebro. Eso sí, siempre sin dejar de lado ni los ratones, ni los pájaros cantores.
En los primeros, se demuestra que FoxP2 no "sólo" participa en el lenguaje, sino que también desempeña un papel importante en el aprendizaje de determinadas habilidades motoras, hecho que tampoco debería sorprender, ya que desde el principio se le suponía este papel por su localización en el cuerpo estriado, precisamente la porción del cerebro implicada en este aprendizaje (refresquemos la memoria, aquí).
Los pájaros cantores han seguido proporcionando artículos a quienes los han utilizado como animales de experimentación. Algunos de los artículos producidos son técnicamente complejos. Sirva de muestra éste en el que consiguen eliminar FoxP2 de una zona concreta del cerebro (En el basal Ganglia Nucleus Area X, que no tengo ni idea de donde se encuentra). Esta supresión la consiguen mediante el uso de lentivirus con los que se consigue introducir un RNA de interferencia (nuestro viejo conocido) para FoxP2 solamente en las células de este área del cerebro. Así se consiguen tener pájaros con un cerebro normal (porque tienen FoxP2 durante todo su crecimiento), pudiendo ver concretamente el papel de esta proteína en pájaros adultos y en esta zona minúscula del cerebro, llegando a la conclusión de que es importante en la imitación de los cantos de otros pájaros. Impresionante, ¿verdad?.
Un apunte sobre cómo funcionan las revistas científicas... aquí tenéis las fechas de entrega y de aceptación y publicación de este artículo: Received: September 25, 2006; Accepted: October 17, 2007; Published: December 4, 2007. Sacad vuestras propias conclusiones...
18/1/09
FoxP2. VII. La perspectiva humana (2)
Previosuly on FoxP2...
Tras la descripción de la relación de FoxP2 con algunas deficiencias en el habla de una familia, los estudios sobre este gen se centran en su posible papel sobre el lenguaje y la evolució de éste. Los estudios descritos en los capítulos se realizaban sobre un número cada vez mayor de especies.
Bufff... Por aquí parece que no avanzamos. Volvamos a los humanos. A pesar de las diferentes pruebas que indican que FoxP2 no es, ni mucho menos, el único gen implicado en la aparición del habla, se siguen publicando artículos como éste en el que se postula que el cambio en la evolución humana que llevaría de un lenguaje gestual a uno vocal articulado se habría dado en diferentes pasos, el último de los cuales ocurriendo hace 100.000 años y correspondiendo a la mutación de FoxP2. ¿Una sola mutación? ¿Por qué FoxP2? ¿Por qué no poner "y en el último paso, se darían mutaciones en uno o más genes que conducirían hasta la situación descrita? Sospecho que el efecto "publicitario" de FoxP2 tenía mucho que ver... Poner FoxP2 en uno de tus artículos aseguraba un plus a las posibilidades de publicación y financiación. Como hemos podido observar hasta el 2005 los artículos publicados se centraban en el papel "a gran escala" de las mutaciones de FoxP2. Es decir qué síntomas presentaban los organismos cuando tenían mutado o carecían de este gen. En septiembre de 2006 aparecía un completo artículo en el que focalizaban su investigación en el efecto de las mutaciones de FoxP2 sobre la proteína en sí, utilizando para ell líneas celulares humanas establecidas. Gracias a estos análisis empezaron a conocerse mejor las funciones y localizaciones de la proteína codificada por este gen, así como los aminoácidos concretos que participaban en estas funciones. Recordad que las proteínas son tiras de aminoácidos que se pliegan de una forma tridimensional característica que es la que determina sus propiedades. Hay aminoácidos que desempeñan un papel más importante que otros en funciones concretas de la proteína. Los estudios de este artículo (de libre acceso) identificaron a buena parte de los aminoácidos implicados en la localización celular (dónde tiene que encontrarse la proteína), la unión al DNA (recordemos que FoxP2 es un factor de transcripción que se une al DNA y controla la expresión de otors genes), la función transactivadora (la cual determina esta activación de la transcripción) y la dimerización (FoxP2 actúa en parejas, como la guardia civil). Además, en el artículo se analizan las diferentes formas que se producen por splicing alternativo. Muchos de nuestros genes pueden dar lugar a variaciones de una proteína uniendo de manera distinta los diferentes exones que presentan (para una explicación un poco más extensa, ojearos esta entrada anterior obre Alus y exones). Este artículo sirvió como pistoletazo de salida para otros artículos basados en la funcionalidad y localización de esta proteína, como este,
A partir de este momento se pueden seguir tres grandes vías de investigación referentes a FoxP2
Las siguientes entradas las dedicaremos a cada una de estas tres "vías de investigación".
Image: G3Pro, Wikimedia commons.
11/1/09
FoxP2. VI. La perspectiva humana (1)
 Previously on FoxP2...
El 2005 FoxP2, el "gen del habla", ha recorrido un largo camino en 4 años... pasando de los pulmones de ratón [1] al cerebro de una familia de humanos con deficiencias en el habla [2] y de aquí a los pájaros cantores [4]. Pero aún quedan 3 años por delante...
2005: El cerco se cierra y se expanden las especies
2005 es otro de los años importantes para la fama de FoxP2 ya que se describieron nuevos casos de alteraciones del habla ligadas a modificaciones de este gen en pacientes sin ningún parentesco con nuestra ya famosa familia KE inicial. De 49 afectados por trastornos del habla, 3 presentaban "fallos" en FoxP2. Los focos se encendían de nuevo. (El mismo mes en que aparecía este nuevo artículo, se publicaba un extenso trabajo de un investigador de Sevilla, A. Benítez Burraco, en dos partes, I, y II)
Un mes después se publica un trabajo con ratones en los que el gen FoxP2 está alterado. Los ratones con las dos copias "malas" del gen presentaban alteraciones graves de la movilidad y muerte prematura. La cosa iba en serio. Si, en cambio, sólo tenían una copia alterada (eran heterozigotos) tenían desórdenes en su vocalización "ultrasónica" (la llamada entre cría y madre es inaudible para los humanos), sin ver afectada su memoria o su capacidad de aprendizaje. FoxP2 parecía, por tanto, desarrollar un papel importante también en la "vocalización" de los roedores. En este estudio sitúan la expresión de FoxP2 en el cerebelo, que no es el cuerpo estriado, pero también participa en la "memoria" que hemos comentado antes y en los movimientos precisos y repetitivos, como hablar (para algunas personas más que para otras).
Mientras, otros trabajos investigaban sobre la secuencia espacial y temporal de la expresión de FoxP2 en peces cebra. Básicamente, dónde y cuándo se fabrica la proteína FoxP2 durante la formación del cerebro y cerebelo de esta especie. Nuevas especies. Nuevos datos. Nuevos artículos.
Image: Wikimedia
30/12/08
FoxP2. V. Pájaros y árboles.
Anteriormente en FoxP2... Previously on FoxP2...
Descubierto en pulmón [1], pero rápidamente asociado al lenguaje [2], el gen FoxP2 empieza a salir a la luz de los neurobiólogos [3], y ornitólogos [4].
El tema de los pajaricos seguiría dando de sí. Un año después (2005) aparecía este trabajo (aquí) en el que se secuenciaba el gen FoxP2 de diferentes aves cantoras (el artículo no es de pago, así que podéis acceder a él y ver la lista de las especies analizadas) para luego comparar su secuencia entre sí y con otros vertebrados, como los humanos. Los resultados indicaban que no había variaciones importantes entre las aves, pero sí entre éstas y los humanos (lógico, estamos más separados evolutivamente). Las mutaciones que aparecen en el FoxP2 humano no aparecen tampoco ni en delfines, ballenas o murciélagos. Dicho de otra manera, la ristra de letras del gen de los humanos es "único"... ¡ah! nuestro antropocentrismo respira aliviado. ¿Tiene mucha importancia este último dato? No. Las diferencias en las secuencias de los genes no son raras y aumentan con la distancia filogenética de dos especies. Es decir, dos especies que se separaron evolutivamente hace mucho tiempo tendrán las secuencias de genes más distintas que las especies que hace menos tiempo que divergieron. Por ejemplo, los genes de rata y ratón son mucho más parecidos en su secuencia que los de rata y gusano. Se pueden construir "árboles" de los genes basándonos en las similitudes de sus secuencias de nucleótidos. Aquí tenéis el de la familia FoxP (al que he llegado por este camino: Pubmed gene, homologene, orthology, y treefam, recursos todos ellos gratuitos).
En este árbol se representan los genes y secuencias susceptibles de ser genes de esta familia. Como cualquier árbol genealógico, contra más cerca están dos genes, más emparentados están; más tiempo hace que sus caminos evolutivos divergieron de los de sus "tatarabuelos". Lo primero en lo que nos tenemos que fijar es en los grandes grupos que aparecen (marcados con colores). En azul vemos los FoxP3, los "primos lejanos" del resto (fijaos en que su línea principal, la del "72", sería hija de la del "53" que nos queda a la izquierda, y por tanto, sólo tendría una "hermana", la "100" de la que salen todos los otros grupos coloreados). Estos otros grupos son FoxP4 en verde, FoxP1 en rosa y nuestro FoxP2 en amarillo. Fuera de la coloración encontramos genes parecidos (homólogos) a los FoxP de moscas (DRO) y gusanos (CAE y SCH). Centrémonos en FoxP2.
Como hemos dicho, a más alejadas se encuentran dos especies, más diferencias presentan sus genes homólogos. En este sentido los árboles derivados de la comparación de la secuencia de los genes se pueden utilizar como árboles genealógicos de las especies. Esto suponiendo que se hayan acumulado las mutaciones de manera constante en todas las líneas evolutivas. Si, como parece desprenderse del artículo que ha desencadenado toda esta reflexión, existe alguna línea "privilegiada" que acumula más "mutaciones" que otras que justifiquen la "especialidad" de esa especie, el gen de esa especie no se encontrará entre los genes homólogos de las especies más cercanas, sino que se encontrará "a parte" de éstos. Pero, oh tragedia, no es así.
En el zoom podéis ver cómo el gen FoxP2 de humanos está bien cerquita de los chimpancés (Pan) y Macacos. Este "trío" de homólogos está muy emparentado con los FoxP2 del resto de los mamíferos, ratones (Mus), ratas, toros (Bos), perros, delfines, y, a cierta distancia, ornitorrincos. Relacionado con este "pack" encontramos el FoxP2 del gallo. Y a más distancia el de una rana (Xenopus). Este grupo de los "vertebrados terrestres" está emparentado con el resto de genes FoxP2 que corresponden a los de los peces (Danio, Tetraodon, Fugu, Gasterosteus, y Oryzias). Queda claro que el FoxP2 de humanos está donde tiene que estar por secuencia, y que no tiene nada "más especial" en cuanto a su ristra de nucleótidos que el del resto de organismos.
En la siguiente entrega pasaremos al 2005, la perspectiva humana.
28/12/08
FoxP2. IV. Pajarito, ¿cómo estás?
Anteriormente en FoxP2. Previously in FoxP2...
Tras su descubrimiento en pulmón de ratón [1], FoxP2 se ve implicado en la aparición del lenguaje humano [2]. Los estudios sobre este gen se suceden [3]...
2004-2005: Blackbird singing in the dead of night
Entramos en 2004 con un artículo en el que se analiza la expresión de los dos genes (FoxP1 y FoxP2) en pájaros cantores (el diamante mandarín, Taeniopygia guttata). Recordemos que FoxP2 se encuentra en todos los vertebrados, y los diamantes mandarines no son una excepción. Estos pájaros "modulan" su voz a lo largo de su vida como un sistema de comunicación, como nosotros. Por tanto, parece que los resultados que se deriven del estudio de estos pájaros serán extrapolables a humanos. Veamos cuáles fueron estos resultados.
Este artículo demuestra que FoxP2 y FoxP1 se expresan en el cuerpo estriado también de los diamantes mandarines, incluyendo las secciones de este cuerpo encargadas de la integración de estímulos sensomotrices y del control de movimientos precisos y coordinados (los cuales intervienen tanto en el habla como en el "canto"). Apuntan, además, al probable papel de FoxP1 en alguno desórdenes lingüísticos, puesto que se expresa en los mismos lugares del cerebro de estas aves.
En junio de ese año la directora del centro donde se produjo este estudio, publicaba ya un review... ninguno de los otros firmantes del primer artículo aparecía en este último. Por cierto, ¿el título del artículo de junio? Componentes genéticos del aprendizaje vocal. (un par de años después el mismo grupo de investigación comprobaría que la cantidad de proteína FoxP2 disminuye en el cerebro de los pájaros machos que cantan para ellos mismos, pero no en los que cantan para las hembras. Si es que la soledad es muy mala. Bromas a parte, estos resultados demostraron que la expresión de FoxP2 no es fija, sino que depende de factores externos).
En la entrada siguiente seguiremos dando el cante y os presentaremos el árbol de familia de los genes FoxP.
25/12/08
FoxP2. III. Evolución, cromosoma y cerebro.
En la entrada anterior. Previously on FoxP2... .
Un gen descubierto en pulmón se convierte en el principal culpable de una deficiencia en el habla. Se prepara el gran salto para ser reconocido como... "el gen del habla". Pero, ¿es esto cierto? ¿qué otros secretos y polémicas encierra este gen?. Continuamos con nuestra historia.
Si FoxP2 tenía que ser un gen clave en nuestra evolución, tenía que serlo. En diciembre de 2002 apareció un artículo en el que se analizaba la tasa de cambios (mutaciones) en la secuencia de diferentes proteínas de humanos, chimpancés y ratones, con el argumento de que "los genes responsables del fenotipo humano deben haberse encontrado bajo presiones selectivas alteradas durante la evolución humana y, por tanto, mostrarán cambios en la tasa de sustitución a nivel de su secuencia proteica". Vamos, que los genes que "nos hacen humanos" (fenotipo) presentarán más cambios que los que no importaron tanto en nuestra "carrera" homínida. De sus análisis emergen dos genes, PRM2, implicado en la generación de espermatozoides, y que ellos relacionan con la presión selectiva sexual (?), y, como no, FoxP2. Comparándolo con otros mamíferos, el FoxP2 de los humanos era el más diferente (sic). Con estos resultados se afirma que FoxP2 "puede haber jugado un papel en el origen del habla humana". Os recomiendo que os leáis el abstract (la introducción-presentación del artículo), vale la pena. Si además queréis leéroslo entero, podéis, pues el artículo no es de pago.
2003: Cromosomas y cerebros
En enero de 2003 aparece un nuevo review, Descifrando las bases genéticas de los desórdenes del habla y del lenguaje en el que se vuelve a hablar de los diferentes orígenes de estos desórdenes y en el que se señalan otras regiones de los cromosomas 2, 13, 16 y 19, como responsables de algunos de estos desórdenes. A FoxP2 le aparecían compañeros... (estos mismos resultados se pueden ver comentados en este artículo del grupo de investiación colombiano encabezado por D.A. Pineda)
El análisis de FoxP2 iba avanzando y se iba estudiando dónde se expresaba (encontrándose, entre otros, en el cerebro) y qué especies lo presentaban. FoxP2 existe en todos los vertebrados en los que se ha buscado. Incluído el pez cebra. En junio de 2003 ya se hablaba de estos descubrimiento, pero esto no impedía a Marcus y Fischer defender el papel de FoxP2 en el lenguaje ya que este gen "puede, sin ser específico de cerebro (recordad que también se expresa en pulmones) o de nuestra especie, proporcionar un incomparable punto de entrada en el conocimiento de las cascadas genéticas y los caminos neuronales que contribuyen a nuestra capacidad para el habla y el lenguaje". (Dos años después aparecerá un artículo de revisión de resultados en el que se comentarán los últimos avances en este sentido).
En julio de 2003 se precisó un poco más en el lugar de expresión de FoxP2 en el cerebro. El cerebro es un órgano extremadamente complejo. Pese a esta complejidad parece que exite cierta especialización de sus regiones. Resulta que FoxP2 (y su "primo-hermano" FoxP1) se expresa en el Cuerpo estriado, una región especializada, según parece, en la producción de movimiento y de otras respuestas, así como de la memoria a largo plazo de secuencias de movimientos asociades a "habilidades" (procedural memory). El habla podría ser una de estas "habilidades", con lo que, según sus autores, los resultados de este artículo refuerzan aún más el papel de FoxP2 en el habla.
En la siguiente entrega, alguien volará sobre el nido del cuco
18/12/08
FoxP2. II. 2001 Odisea en el lexinoma
En la entrada anterior... Previously on FoxP2...
2001-2002: El monolito del lenguaje (Reprise)
Empecemos por el principio. FoxP2 aparece por primera vez mencionado en unartículo del año 2001 (es un gen "joven"). ¿Fue identificado en el cerebro? ¿Cantaba? No. El artículo de Weigo Shu y colegas identifica dos nuevos genes, FoxP1 y FoxP2, en pulmón de ratón y actuando como represores. Es decir, impidiendo que determinados genes se expresen. ¿Pulmón? ¿Represor? ¿Existirá entonces un "gen del silencio" inhibido por FoxP2?
El artículo anterior apareció en julio del 2001. En octubre se publica la primera relación entre este gen y el habla. El equipo de Oxford de Anthony Monaco (recordad que el jefe siempre firma el último) llevaba tiempo estudiando personas con déficit en el habla y había encontrado una familia (familia KE) en la que este defecto se heredaba como si se tratase de una enfermedad genética "mendeliana" (que depende de un solo gen). Habían llegado incluso a identificar en qué región del cromosoma 7 humano se encontraba el problema. Y en esa región estaba FoxP2. Los individuos que tenían afectada la región del cromosoma 7 donde se halla FoxP2 presentaban dificultades en el habla. ¡Bingo! Si no tienes el gen y tienes dificultades al hablar, esto quiere decir que el gen es necesario para esta función. Listo. Tan importante descubrimiento mereció comentarios tanto en el propio Nature, como en su "rival" Science, en el que, por cierto, se refieren a nuestro protagonista como el "primer" gen del habla.
Diferentes artículos aparecidos posteriormente buscaron este gen en otros pacientes con déficits en el habla y no encontraron relación con FoxP2. Dicho de otra manera, a pesar de tener "bien" el gen FoxP2, los pacientes presentaban carencias a nivel del lenguaje (como el caso de los 270 niños de 4 años analizados en este artículo). Queda claro, pues, que FoxP2 no es el único gen del habla, porque hay gente con problemas, a pesar de que su FoxP2 es tan bueno como el de cualquier otro.
Estos resultados no impidieron que se desatara la euforia y que incluso Science se atreviera a calificarlo como el "gen del habla" en este review del 2002 (los review son artículos en los que se intenta poner todo lo que se conoce sobre un tema en concreto; contienen muchas referencias y normalmente ningún experimento). Rizando el rizo, otros de estos reviews lo incluían entre "los genes que nos hacen humanos".
Por otro lado se publicaron otros trabajos que pretendían sembrar cordura en este terreno. Es el caso del artículo de Diane Newbury y el propio Anthony Monaco con el que pretenden analizar el impacto, un año después del descubrimiento de la relación de FoxP2 con el habla, siendo que ésta se había demostrado solamente en una familia.
En la próxima entrega cambiaremos por fin de año (2002) y veremos cómo FoxP2 se convierte en una nueva diana evolutiva y neurobiológica.
16/12/08
FoxP2. I. Introducción. El gen ¿parlante?
 Hace un poco más de un mes, Quim nos habló, en su entrada El gen de los ojos verdes, sobre la confusión que existe entre la función de los genes y lo que éstos "hacen". La entrada incidía sobre el error común que representa el creer que existe un gen para el color de los ojos, para la hemofilia o para tener unas proporciones helénicas perfectas. Tampoco existe el "gen del habla", por mucho que hace unos años se comentase en más de un "noticiario". Este gen en cuestión es el FoxP2. ¿Es realmente el gen del habla? ¿Es el único?
Por partes. Los genes codifican para proteínas. Lo que quiere decir que a partir de ellos se construyen determinadas proteínas. Y nada más. ¿Cómo puede el gen FoxP2 ser el gen del habla... ?¿Qué hace? ¿Una proteína que suena?
Las proteínas pueden tener diferentes funciones. Algunas son meras estructuras sobre las que se sostiene y vive la célula. Otras son capaces de "hacer cosas" (las famosas enzimas). Y en otro grupo encontramos las que son capaces de unirse al DNA y controlar la expresión de diversos genes, es decir, su transcripción... FoxP2 es uno de estos factores de transcripción (comentados ya Back to the future, Origen genético y epigenético de la magia, o ¿Quién corrompe a los linfocitos?). O sea que su función es controlar la expresión de otros genes, que a su vez sirven de plano para la construcción de nuevas proteínas, etc...
Veamos qué conocemos hasta el momento de FoxP2 y veremos a qué conclusión llegamos.
2001-2002: El monolito del lenguaje
Empecemos por el principio. FoxP2 aparece por primera vez mencionado en un artículo del año 2001 (es un gen "joven"). ¿Fue identificado en el cerebro? ¿Cantaba? No. El artículo de Weigo Shu -y colegas- identifica dos nuevos genes, FoxP1 y FoxP2, en pulmón de ratón y actuando como represores. Es decir, impidiendo que determinados genes se expresen. ¿Pulmón? ¿Represor? ¿Existirá entonces un "gen del silencio" inhibido por FoxP2?
En las siguientes entregas de FoxP2, el gen parlante, comentaremos más artículos que se han ido publicando desde su descubrimiento y veremos por qué se ha ganado la fama que tiene.
2/12/08
Reparaciones que envejecen... SIRT, YES SIRT!
Aunque no lancemos las campanas al vuelo demasiado rápido, ya que queda por comprobar la vinculación que algunos estudios hacen del papel de SIRT1 en la mejora de la supervivencia de células cancerosas (en su esfuerzo por reparar lo que está alterado...)
No, no me he confundido... no quería decir que "embellecen"... (si no, mirad la foto). ¿No os ha pasado nunca que, al abrir una ventana para intentar echar a una mosca, se os ha colado un par de ellas (además de no conseguir echar a la primera, cosa que en general me pasa a mi...)?
Pues eso parece que le pasa también a ciertos mecanismos de reparación de nuestro ADN cuando intenta reducir los efectos que el paso del tiempo tiene sobre su integridad...
Al menos, eso parece desprenderse de lo que publica el biólogo molecular David Sinclair en la revista Cell, donde estudia los efectos que la movilización de la proteína SIRT1 (conocida como reparadora de daños en el material genético de los mamíferos) sobre otros procesos ligados al envejecimiento.
Digamos, para empezar, que uno de los procesos más ligados al envejecimiento es, precisamente, la degradación del ADN. Imaginad: la "copia master" de vuestro disco preferido (ADN) se ha estado utilizando para hacer millones de copias de trabajo (ARN) durante años y años. Pese a que estas copias de trabajo se hacían para que no se estropease la "master", ¡ay...! con los años la cosa empieza a degenerar.
Afortunadamente, todos los organismos cuentan con "proteínas patrulleras", encargadas de reparar desperfectos cuando se detectan signos de que estos daños han podido producirse. Una de las familias de proteínas reparadoras más célebres la constituyen las sirtuinas. SIRT 1 es una de ellas.
Pero, y aqui empiezan los problemas, ya hace años que se descubrió que Sir2, el equivalente de SIRT1 (de mamíferos) que encontramos en las levaduras, "descansaba" sobre una sección del ADN (cuando no tenía que reparar). En esta sección, Sir2 no permitía la expresión del gen que se encontraba codificado (de hecho, Sir2 son las siglas inglesas para "regulador de la información silenciosa"). En cambio, cuando un daño en el ADN mobilizaba la proteína Sir2, la sección ocupada por la proteína en reposo quedaba libre, y la expresión del gen codificado era posible. Lo más impactante es que este gen provocaba la esterilidad de la levadura (una típica característica de senescencia en hongos).
Conclusión: queriendo detener el envejecimiento provocado por las rupturas del ADN, la proteína Sir2 permite la expresión de un gen que provoca envejecimiento... maldita la gracia, que decía mi abuela...
Lo que Sinclair y sus colegas de la Harvard Medical School se han preguntado es "¿hay algun tipo de proceso similar en el equivalente de Sir2 en mamíferos (SIRT1)?"
¿Y qué han hecho? Para empezar, han echado un vistazo a dónde se localiza SIRT1 cuando no está ocupada reparando daños, y han visto que se encuentra enganchada a una región de ADN que no se transcribe, cosa que sugiere el mismo rol "silenciador" que Sir2 tiene en las levaduras.
A continuación, provocaron envejecimiento prematuro con la exposición a peróxido de hidrógeno (ya sabéis que la oxidación es uno de los peligros más grandes que afrontan nuestras células, y se cree que constituye el principal factor de envejecimiento celular) Y se comprobó que más del 90% de la proteína SIRT1 abandonaba su lugar original para dirigirse a las rupturas causadas en el ADN por la oxidación.
Y ahora, el aunténtico objetivo de este estudio: ¿Qué pasaba con las regiones antes ocupadas por SIRT1? Pues los estudios posteriores parecen indicar que los genes en principio silenciados por SIRT1 pasan a expresarse, provocando expresiones anómalas que podrían encontrase en la base de malos funcionamientos y errores propios del envejecimiento celular.
Si esta cuadratura del círculo biológica se confirma, podríamos decir que nos encontramos ante un "callejón sin salida" de la vida: los esfuerzos de la célula para controlar su envejecimiento resultan incluso en su aceleración... Eso sí, tal y como afirma el propio Sinclair, el estudio de SIRT1 puede conducir a mejoras en nuestra comprensión sobre el envejecimiento: no en vano, en su experimento, los ratones a quien se dio un suplemento externo de SIRT1 vivieron más de 25 días más que el grupo control, después de haber estado expuestos a los daños por oxidación...
29/11/08
Del origen de los pelos ¡Eso pareces tú! ¡Un reptil peludo!
 La entrada de hoy es peliaguda. En el último número del PNAS ha aparecido este artículo relacionado con el "origen" de los pelos de los mamíferos.
Los mamíferos son, actualmente, los únicos animales con pelo que existen. Los pelos representan una excelente herramienta adaptativa (aunque la gente ahora luche por quitárselos). La "pelambrera" actúa como un aislante térmico, dificulta o ralentiza el intercambio de calor con el medio. Nos mantiene calentitos cuando hace frío.
¿De dónde viene el pelo? Si todos los mamíferos tienen pelo, el antepasado común de éstos también debería tenerlo... y este antepasado fue un reptil. Hace unos 275 millones de años se diferenció un grupo de reptiles, llamados Terápsidos. Éstos se adaptaron a muchos ambientes distintos en lo que se conoce como radiación evolutiva. Muchas especies de terápsidos empezaron a crecer y multiplicarse, constituyéndose en el orden predominante durante unos cuantos millones de años, hasta finales del pérmico, hace unos 250 millones de años. En esta época tuvo lugar la gran extinción del pérmico-triásico. Aunque no es la más famosa (no la confundáis con la de los dinosaurios), ésta es, sin duda, la mayor extinción que se ha dado en el planeta tierra. Más del 90% de las especies marinas y un 70% de las terrestres fueron borradas del mapa. Empezó un nuevo orden en el que fueron unos nuevos reptiles los que se adaptarían a la inmensa mayoría de nichos ecológicos. Hablamos de los dinosaurios.
Los terápsidos no se extinguieron del todo, aunque ya no volverían a tener el peso en cuanto a número de especies y extensión que habían tenido. Relegados a unos nichos concretos fueron sucediéndose las adaptaciones, y por tanto, las especies, géneros, familias y órdenes. De entre los terápsidos supervivientes cabe destacar el orden de los Eutheriodonta, en el que encontramos el suborden de los Cynodontia. Los cinodontes son los antepasados directos de los mamíferos y se sospecha que ya eran peludos y de sangre caliente. Así que el pelo surgió en algún momento de la historia evolutiva de los terápsidos, antes (un poco o mucho) de los cinodontes. Actualmente no queda ningún superviviente de los reptiles cinodontes (exceptuándonos a los mamíferos, claro). ¿Cómo podemos mirar, entonces, de dónde vienen los pelos? Pues en el DNA. El DNA de cada especie es como una lengua de las que se habla actualmente. La etimología compara cómo son las palabras, cómo se conjugan los verbos, cómo se construyen las frases, y va "tirando" hacia atrás viendo que algunas lenguas actuales comparten una lengua común más reciente que otra. El castellano y el italiano comparten el latín; éstos comparten con el inglés la raiz indo-europea; etc (sobre este tema, recomendaros el libro Unfolding the Language, de Guy Deutscher, un excelente libro del que, seguro, os hablaré cuando me lo acabe).
 Con el DNA se puede hacer lo mismo, comparar cómo suenan las palabras (comparando letra a letra de la secuencia de genes), cómo se "conjugan" estos genes (comparando su estructura de intrones y exones), cómo se construyen las frases (comparando las secuencias reguladoras, promotores o los conjuntos de estos genes), para extrapolar la historia evolutiva de las especies que "hablan" cada DNA.
Y esto es lo que han hecho los investigadores autríaco-italianos, encabezados por Erwin Tschachler (el último firmante, el primero es Leopold Eckhart, algún día tendremos que explicar cómo funcionan los artículos científicos), comparar las secuencias de diferentes especies vivas para ver qué similitudes y diferencias presentan a nivel de los "pelos".
Los pelos están mayoritariamente formados por las proteínas alfa-queratina. Al ser proteínas, están codificadas por genes, palabras, frases comparables del DNA. Pero para poder comparar esta frase en diferentes organismos, lo primero que tenemos que saber es si tienen genes similares. Está claro que todos los mamíferos tenemos estos genes... como no podemos hacer análisis genéticos a terápsidos extintos, tendremos que tirar del hilo filogenético en busca de nuestros "primos" evolutivos más cercanos.
Los terápsidos, nuestros retataraterapsidoabuelos, se encuentran dentro de la clase de los Synapsida. Esta clase tiene una clase "hermana" que es la de los Sauropsida. Dentro de esta clase encontramos a todos los reptiles vivos actuales... y a las aves (recordad que las aves provienen evolutivamente de una parte de los dinosaurios). Los autores, por tanto, empezaron su particular búsqueda de genes en los genomas de un reptil (el anolis verde, Anolis carolinensis) y del pollo (Gallus gallus). ¿Pollo? ¿Alguien ha dicho pollo? ¿Por qué estos dos precisamente? Porque son dos de los organismos que tienen secuenciado todo su genoma (disponibles para todo el mundo en la página del PubMed, aquí). De hecho, gracias a que estos genomas (junto con otros muchos) son de dominio público la primera parte del artículo (buscar los genes de las alfa-queratinas y compararlas) las podría haber hecho cualquiera de nosotros. Pero, claro, primero se nos tendría que haber ocurrido...
Sus búsquedas les llevaron a encontrar seis genes codificantes para alfa-queratinas en el anolis, y sólo uno en el pollo. Estos genes, además, están emparentados con los genes de las alfa-queratinas de los mamíferos. Si tanto los Synapsida (mamíferos), como los Sauripsida (reptiles actuales y aves) presentan estos genes en su DNA, significa que estos genes ya se encontraban en un antepasado común. ¿En cuál? Si tiramos un poco más del hilo evolutivo la siguiente clase "hermana" la constituye la de los anfibios... Y, según los autores, éstos no tienen genes de alfa-queratina. El siguiente paso atrás, los peces, tampoco.
Todos estos datos dibujan un nuevo escenario para la aparición de los genes que forman nuestros pelos. Los genes de la alfa-queratina no son exclusivos de los mamíferos. Aparecieron en algún momento temprano de la historia evolutiva de los reptiles, y estarían presentes en los terápsidos. En el camino evolutivo hacia las aves se fueron perdiendo parte de estos genes.
A partir de aquí el artículo se complementa con un estudio de expresión de estos genes en diferentes tejidos (dónde y cuándo se expresan), mediante estudios de RT-PCR e inmunolocalización. De acuerdo, para hacer ésto sí se necesita un laboratorio, pero para la primera parte del artículo, basta un ordenador. Tengo la sensación que muchas veces se piden estos últimos resultados "de laboratorio" para evitar que cualquiera pueda publicar, porque ésta es la conclusión que nos tiene que quedar de este artículo: por un pelo no hemos publicado cualquiera de nosotros un artículo similar... sólo nos hace falta encontrar un gen interesante y realizar una búsqueda del mismo en otros organismos mediante las herramientas gratuitas del PubMed.
Mi imaginación empieza a volar y veo un futuro en el que habrá una "revista" especializada en las búsquedas y comparaciones de genes en la que todo el mundo podrá publicar... quizás más que una revista, sería un blog abierto (tipo el cedazo), con un tutorial de cómo realizar las búsquedas y comparativas. Hay tantos genes y genomas... Yes we can! Perdón me dejo llevar.
¿Alguien propone la primera búsqueda de la era democratagenómica?
Para más información sobre la historia evolutiva de los mamíferos os recomiendo este artículo de Murphy, WJ, et al. Genome Res. 2007. 17: 413-421
Images:
1. Theriognathus by DiBgd. Wikimedia commons.
2. Styracocephalus, by Karkemish. Wikimedia commons
3. Thrinaxodon fossil, by Esv. Wikimedia commons
4. The story of the word mother, by Hendrik Willem van Loon. Wikimedia commons
5. Cutreárbolgenealógico. Cosecha propia.
23/11/08
Gusiluz, el molusco fotosintético y la transferencia horizontal de genes
 Uno de los temas más utilizados en los argumentos de novelas, cómics, videojuegos o películas de aventuras es el del equipo de especialistas. Desde El Señor de los Anillos, las crónicas de la Dragonlance, la serie de Comandos, hasta los cómics de El Jabato o El Capitán Trueno (¿o era el mismo?), se han constituido equipos, grupos, hermandades, o como se les haya querido denominar, de personajes que, juntos, generan un "ente" muy superior a la suma de sus habilidades. Enanos, elfos, humanos y hobbits; arqueros, guerreros, magos y sanadores; francotirador, espía, cepador...
Siguiendo este "hilo argumental" en esta entrada viajaremos desde la máxima de "la unión hace la fuerza" hasta un molusco fotosintético, nuestro particular gusiluz.
En biología la máxima "1+1 suman más que dos" se ha seguido en muchas ocasiones. Los líquenes son asociaciones de algas con hongos que producen algo nuevo. Las sociedades de insectos, con sus especializaciones constituyen verdaderos supra-organismos. Los mismos organismos pluricelulares somos sociedades de millones de células especializadas.
Las propias células eucariotas son asociaciones duraderas de diferentes bacterias (es la famosa teoría endosimbiótica). ¿Cómo se produjo esta asociación? ¿Cómo bacterias tan diferentes (la proto-célula nucleada y los precursores de las mitocondrias y cloroplastos) acabaron juntas? Una de las teorías que se barajan es la de la "mala digestión" en la que nos encontraríamos una bacteria grande que se "tragaría" otras bacterias sin digerirlas del todo. Esta asociación se adaptaría mejor al medio que le habría tocado vivir y fue seleccionada positivamente dando lugar a las células eucariotas actuales
En el último número del PNAS (Proceedings of the National Academy of Science) se publica un artículo (Firmado en primer lugar por Mary Rumpho, y editado por Lynn Margulis) centrado en el estudio del molusco fotosintético Elysia chlorotica, una babosa marina de color esmeralda.
Los animales, hongos, algas eucariotas y vegetales son todos organismos eucariotas porque están formados por las células eucariotas. Todas las células de estos supergrupos tienen núcleo y mitocondrias; las células de las algas eucariotas y los vegetales son las únicas que tienen cloroplastos. Los cloroplastos son los orgánulos que realizan la fotosíntesis transformando el dióxido de carbono y el agua en glucosa (el combustible de los seres vivos) gracias a la energía que le aporta la luz solar. Los cloroplastos, llenos, entre otras, de clrofila, son los que le dan el color verde a las plantas... y a la babosa marina Elysia chlorotica (que no es lo mismo que decir la babosa del Elíseo, que nadie piense mal. Quelqu'un m'a dit).
Un momento, un momento, no nos desviemos... ¿no decíamos que eran exclusivos de algas aucariotas y vegetales? Y así es. Esta especie de babosa ha coevolucionado con una especie de alga pudiendo "adoptar" sus cloroplastos para su uso y disfrute.
Cuando una nueva babosa nace, lo hace sin cloroplastos... a lo largo de su vida los va adquiriendo. ¿De dónde? Entre los platos preferidos del gusiluz se encuentra la alga eucariota Vaucheria litorea. Cuando un gusiluz come estas algas no digiere todos sus cloroplastos. Algunos se incorporan a las células de su sistema digestivo. Y allí siguen su tarea fotosintética, produciendo glucosa para el gusiluz.
Pero, ¿es esto así de sencillo? En un principio lo parece. Esa alga tiene algo (perdón) que le produce glucosa. Me la como, se lo quito y me lo quedo. ¿Por qué no hacemos nosotros lo mismo? Evidentemente, la cosa no es tan banal.
Durante los cientos de millones de años que llevan coevolucionando los orgánulos de las células eucariotas se han establecido relaciones que aseguran su funcionamiento como un todo, pero que hacen que los componentes de estas células, pese a que antes eran bacterias de vida libre, ahora no puedan sobrevivir por separado. Una mitocondria ya no puede sobrevivir sin la célula eucariota ya que algunos de los genes que codifican para proteínas de la mitocondria se encuentran ahora en el núcleo. Sin el núcleo, las mitocondrias no están completas. Y lo mismo pasa con los cloroplastos. Los cloroplastos de las algas, incluídos los de la Vaucheria litorea, son incapaces de sobrevivir y funcionar correctamente sin las proteínas codificadas en genes que se encuentran en el núcleo de las algas (como la proteína psbO) .
Y aquí viene la novedad del trabajo que hoy comentamos. Los cloroplastos de la Vaucheria sobreviven y funcionan dentro de las células de la babosa Elysia pese a que no tienen "cerca" el núcleo de su alga. Si necesitan las proteínas codificadas por el ADN de la alga... ¿cómo funcionan en la babosa? Porque el núcleo de la babosa también codifica para estas proteínas (al menos, para la psbO). Es decir, en el DNA de todas las babosas de la especie E. chlorotica encontramos genes originarios de algas (como se demuestra al comparar la secuencia de los genes de las dos especies).
Es evidente que las babosas y las algas han seguido caminos evolutivos muy y muy distintos desde que se separaron de su ancestro común y que los genes que las algas adquirieron durante sus miles de millones de años de convivencia con los cloroplastos son totalmente ajenos a los animales, grupo al que pertenecen las babosas. ¿Cómo han podido adquirir este gen las babosas? Mediante lo que se conoce como Transferencia Horizontal de Genes.
La transferencia vertical es la que se da de padres a hijos y sigue la línea de la historia evolutiva de cada una de las especies. La horizontal se da entre diferentes especies. Esta transferencia se produce sobre todo entre organismos procariotas (las resistencias de determinadas bacterias a antibióticos siguen a veces esta vía); es rara entre procariotas y eucariotas (como el que se da entre el procariota edosimbionte Wolbachia y las células de sus huéspedes insectos y nemátodos); y es prácticamente inexistente entre organismos eucariotas (hasta el momento se han descrito como anecdóticas transferencias entre plantas parásitas y las plantas parasitadas, transferencia de transposones, o transferencias entre las plantas y nemátodos parasitarios). La probabilidad de que se de esta transferencia entre células nucleadas es tan baja que seguramente es necesaria una relación de millones de años entre las especies para que esta transferencia se estabilice, como en el caso de nuestro gusiluz y su plato favorito.
Quedan, como siempre, muchos interrogantes que resolver. Entre ellos, ¿cómo se produjo la integración del gen en el genoma? ¿Recombinación? ¿Virus? ¿Retrovirus? ¿Cuánto hace de esta integración? ¿Qué otros genes se han integrado? ¿Podría ser esta una relación que fuese a más, es decir, que en algún punto las babosas ya naciesen con los cloroplastos? ¿sería entonces una nueva especie? ¿una nueva familia? ¿orden?
Si pensamos ahora en la cantidad de especies que existen sobre la Tierra, en las relaciones que se establecen entre ellas y en la mejora de los mecanismos para secuenciar genomas (nucleares, mitocondriales o de cloroplastos)... ¡cuántas relaciones nuevas nos quedan por descubrir!
4/11/08
El gen de los ojos verdes

Muchas veces, desde estas "páginas", tanto yo como mis compañeros la emprendemos contra ciertas malas prácticas que observamos en determinados estamentos (como en los artículos sobre homeopatía, transgénicos en la asignatura de lengua de la ESO, o creacionismo). Eso sí, no pocas veces la emprendemos contra nosotros mismos o, al menos, reconocemos que muchos de los errores que cometen otros provienen de un error en el planteamiento que científicos y divulgadores ofrecemos cuando tratamos de hacer comprensible nuestra, a menudo oscura, ciencia. (como también hace Dan Agin en su libro "Ciencia Basura", que ya tuve ocasión de comentar).
Uno de los casos más patentes y dramáticos tiene lugar cuando la ciencia quiere hacer comprensible la genética. La genética es una de las disciplinas científicas que ha sufrido la más profunda de las revoluciones, sólo comparable con la revolución de la física a partir de la teoria de la relatividad de Einstein. A lo largo del siglo XX, hemos pasado de a penas poder describir las descendencias esperadas a partir de unos progenitores determinados, a conocer y manipular el sustrato mismo en que estas informaciones se contenían.
En todos aquellos conocimientos en que se da un salto adelante tan potente, es frecuente que la posibilidades de explicar a los no-iniciados los rudimentos del nuevo paradigma sean escasas ya que, para empezar, son los propios expertos los que tienen que hacerse con los nuevos conceptos y la nueva terminología. Es después quando aparece el esfuerzo "vulgarizador" (entendiendo vulgarizar sin ninguna de sus connotaciones negativas, sino solo como "extensible a todo el mundo"). La vulgarización aparece normalmente fruto del interes que despierta en el público la materialización del nuevo paradigma, su aplicación práctica; Creedme, poca gente estaría interesada en la relatividad si no se hubiese corrido la voz de que, a través de sus postulados (i de forma mucho más indirecta de lo que muchos piensan), se llegó a la confección de la bomba atómica.
En el caso de la genética, Elena os podría hablar de la dificultad que hay en hacer accesible al gran público sus principios y técnicas (aprovecho para recomendar su excelente serie Lab Basics, el objetivo de la cual es precisamente este acercamiento).
Una de las estrategias más frecuentes que se utiliza a la hora de explicar los mecanismos de la genética es la analogía de las secuencias de ADN con libros de instrucciones (o con libros en general). Decimos a la gente: "tu ADN tiene la información sobre como es tu cuerpo, si eres blanco o negro, si eres alto o bajo e incluso si has de padecer tal o cual enfermedad". Una vez más, los científicos en general, y biólogos en particular, hemos encontrado una bella analogía para hacer compresible los arcanos de la ciencia... Y una vez más, la poesía de la metáfora ha sido interpretada de forma literal por la sociedad, y nos tenemos que enfrentar a artículos que hablan de "gen de la infidelidad" o "el gen que provoca cáncer"...
Está claro que la analogía del libro de instrucciones es perfecta, pero sólo para hacer una introducción. Imágenes como ésta, abandonadas en el cerebro de alguien que después no investiga más allá, fermentan y generan ideas absurdas, convenientemente alimentadas por medios de comunicación (uno ya no sabe qué prefiere, que hablen de ciencia o, visto cómo lo hacen, que no hablen en absuluto...)
Pero, me diréis, ¿Cuál es el orígen de la confusión? ¿Cómo son las cosas en realidad? ¿Por qué es absurdo hablar de un "gen de los ojos verdes"? Vayamos por partes:
- ¿Qué hay "escrito" realmente en el ADN?
Uno podría a llegar a pensar que el ADN tiene escrito, en su particular alfabeto de 4 letras, cosas como "ojos azules", "alto", "fuerte", "esquizofrénico"... una cosa detrás de la otra... Todos aquellos que lo encuentren una estupidez, deberían plantearse, sin embargo, ¿qué hay escrito, entonces? Pues bien, allí hay, básicamente, dos tipus de información: primero, está escrita la secuencia de aminoácidos que hay que ir pegando, uno detrás del otro, para conseguir una proteína concreta. Se estima que, en el cuerpo humano, tenemos alrededor de 100.000 proteínas diferentes. La secuencia de la mayoría de ellas, está escrita en este código genético. En segundo lugar, hay toda una serie de información práctica sobre el propio funcionamiento de este ADN: donde empieza cada proteína, donde acaba, lugares que permiten activar/desactivar la producción de una proteína dada... es decir, lugares dedicados a la gestión de esta información para hacer proteínas. Eso es básicamente todo: información de secuencias y lugares de gestión del cuando y el como.
Evidentmente, la cosa es mucho más compleja (las secuencias de aminoácidos no sólo contienen la proteína, sino instrucciones sobre dónde tiene que dirigirse, por donde hay que cortarla... Y en la secuencia de ADN también hay trozos (enormes) que no tienen ningún tipo de información mezclados con las secuencias de aminoácidos, y que llamamos "intrones", que son muy importantes respecto a las múltiples combinaciones que una misma secuencia de ADN puede generar. Os recomiento leer este reciente post sobre genética).
- ¿No hay escrito en ninguna parte "hemofílico"?
He aquí uno de los orígenes de la confusión. Cuando hablamos de hemofília, ubicamos el problema en el cromosoma X. Decimos "las mujeres no la padecen, porque tienen dos cromosomas X, y normalmente sólo hay uno defectuoso, pero los hombres sólo tienen un X, así que si es defectuoso, cagada: hemofílico". Pese a que en el fondo es cierto, la forma hace que acabemos pensando que este señor tenía codificada, en algún punto de su cromosoma X, una secuencia de ADN que decía "hemofílico". Y la cosa no va exactamente así...
La mayor parte de casos de hemofília están provocados por la ausencia (o bajos niveles) de un factor de coagulación (el número VIII). Este factor es una proteína, y la información para "construirla" (y en qué cantidades) está en el cromosoma sexual X. Cuando esta información está alterada, la proteína que resulta no es la correcta (no es el factor VIII que debería ser), y todo el metabolismo de la coagulación acaba quedando afectado. Ya veis, un pequeño error entre los miles de genes que forman las proteínas del cuerpo y ser genera una condición bastante compleja...
- Entonces... ¿Por qué tengo los ojos de mi madre?
Los seres humanos tenemos la misma información sobre las mismas proteínas y ubicada en los mismos lugares... ¿Por qué somos diferentes? Somos diferentes por varias razones:
Hay más de una versión de cada proteína que funciona bien, aunque con diferencias; algunas de estas variantes no se dan sólo en proteínas estructurales, sino tambien en enzimas (proteínas que hacen posible reacciones químicas en el organismo), cosa que quiere decir que para una misma reacción química del cuerpo, diferentes personas pueden tener moléculas que hagan el trabajo a velocidades ligeramente diferentes, con eficacias diferentes,...
Por otra parte, cada uno puede tener una información muy particular sobre el "cuánto, cuándo y donde" se activa la síntesis de cada una de las proteínas del cuerpo, cosa que se traduce en que cada uno de nosotros tiene un programa de desarrollo propio.
El color de ojos, por continuar con el mismo ejemplo que he tomado desde el principio, es el resultado de toda una serie de genes: los diferentes genes en los que está escrita la secuencia de aminoácidos de cada uno de los pigmentos de cuerpo, los genes que controlan las cantidades de cada pigmento que se han de producir, y los mecanismos que hacen que las células que pertenecen a una región produczcan una substancia o otra. Además, intervienen factores como el grueso del epitelio del iris y las estructuras de colágeno del estroma del ojo.
Deberíamos intentar abandonar la vieja idea de "la madre tiene los ojos verdes, el padre azules, si el niño los tiene grises es que ha habido cuernos" o su versión posmoderna "no, hay que mirar a los abuelos, que también cuentan! Si los abuelos tampoco los tienen grises entonces sí, cuernos...". En líneas generales la cosa funciona, pero por otras razones: en ninguna parte hay escrito "ojos verdes" y tampoco hay un gen del "pigmento verde". Lo que hay son una serie de cuestiones sobre el grosor del epitelio del iris, más la cantidad de melanina producida por la parte frontal del mismo que sí están determinadas por las diferentes variantes que podemos encontar en el material genético....
Entendido más o menos este mecanismo... ¿Dónde enmarcamos estas estupideces sobre "genes de la infidelidad?". Pues eso, en el apartado estupideces. Reducir el comportamiento humano al imperio de los genes es un error. Y un error peligroso, además. La frenología (que creía adivinar las capacidades intelectuales, pero también las tendencias delictivas, a través de las protuberancias del craneo) ahora nos puede parecer estúpida, pero en su momento sirvió para justificar la pretendida supremacía racial en la Alemania nazi (y en los Estados Unidos de la época, aunque ahora escondan ese vergonzoso pasado).
¿Dónde estableceríamos la culpa de la ciencia?
Nuestro paternalismo a veces nos lleva a aceptar que la gente solo conozca la explicación más superficial: nos conformamos con que la gente repita el dogma "los genes determinan tu biología"; pero como antes decía, estas ideas, abandonadas dentro del cerebro sin más contenido, fermentan y generan ideas pseudocientíficas que pueden volverse en contra de la propia ciencia: quien no ha oído la perversión que se nos atribuye de buscar bebés a la carta por lo que respecta al color de ojos, belleza, inteligencia... todas ellas ideas perversas soñadas secretamente por algunos, pero que a los auténticos científicos nos parecen improductivas, cuando no simplemente absurdas! (cuando los científicos piensan en seleccionar bebés lo hacen pensando en esquivar determinadas enfermedades, y en ningún caso para satisfacer deseos personales, pero en cambio la gente cree que si no se hace es porque los gobiernos han dejado muy claro que lo prohiben!).
Otra culpa de la ciencia la podemos encontrar en nuestra forma de abordar la investigación de los genes. Como muchas veces lo que buscamos es curar una determinada enfermedad o conocer su orgien, acabamos bautizando a los genes implicados con nombres tan desafortunados (para la opinión pública) como "Breast Cancer Gene 1" (gen del cáncer de mama 1). ¿Qué queremos (sin información adicional) que piense la gente que lea ese nombre? Piensan "he aquí un gen que provoca cáncer".
En realidad se trata, como todos, de un gen que hace una proteína. En este caso, lo que se ha visto es que, entre la población de mujeres que han padecido cáncer de mama, este gen se encuentra ALTERADO MÁS FRECUENTEMENTE que en la población femenina en general. Dos cosas a señalar:
ALTERADO: El gen BCG1 lo tiene todo el mundo, hombres y mujeres, con cancer y sin él. Es una alteración de este gen el que se ha relacionado con el problema.
MÁS FRECUENTEMENTE: la alteración no provoca cáncer, pero parece aumentar la posibilidad de tenerlo (de hecho, al menos un 15% de las mujeres con el gen alterado desarrollan cáncer). Esto sólo tiene sentido cuando analizamos poblaciones, ya que no tiene sentido aterrorizar a todas las mujeres con el BCG1 alterado, ya que el 85% de ellas no padecerá cáncer.
El problema es que en la prensa la cosa acaba en "Descubierto gen del cáncer de mama", y el nombre científico del gen ayudará a mantener la confusión...
El debate podría alargarse si explorásemos hasta qué punto los científos bautizan a los genes con nombres más o menos espectaculares para conseguir fondos, y eso nos llevaría a plantearnos los problemas de una investigación que depende de su comerciabilidad para conseguir fondos, pero creo que por hoy ya me he alargado bastante.
En resumen, si todos tuviésemos presente como funciona en realidad la variabilidad genética y cual es el tipo de información almacenada, todos tendríamos claro de qué cosas puede haber un "gen responsable", de que cosas sólo puede haber ciertas predisposiciones y de qué cosas sólo podemos encontrar absurdas informaciones pseudocientíficas...
25/10/08
Articulos recientes sobre temas tratados: transposones, desdiferenciación y pérdida de olfato
Buscando el artículo para comentaros este domingo me he encontrado con 4 artículos recientes sobre temas que hemos tratado ya en este blog y me ha parecido interesante mostraros una pequeña pincelada de hacia dónde se dirigen los caminos de cada una de estas especialidades.
Memorias de África: Transposones adaptativos en moscas Acaba de aparecer en PLoS Biology un artículo sobre los elementos móviles de los que hablábamos en una reciente entrada. En este arículo se analiza el papel de los transposones en la adaptación a los diferentes ambientes que se ha encontrado Drosophila desde su salida de África. De los 902 elementos transponibles analizados, 13 parecen haber desarrollado alguna función adaptativa. Además, la mayoría de ellos no se han insertado en regiones codificantes, sino en regiones intrónicas o en regiones reguladoras de la expresión.
La melena de Sansón: células pluripotentes de células capilares
Si hace poco hablábamos de la reprogramación de células pancreáticas para generar células beta (En Back to the future), esta semana se han publicado un par de artículos en esta misma línea de investigación. En el primero, se han conseguido generar células pluripotentes (en Back to the future encontraréis una explicación teórica sobre estos conceptos) a partir de queranocitos, las células más abundantes de la piel. Esta reprogramación se ha conseguido "tocando" sólo 4 interruptores: OCT4, SOX2, KLF4 y c-Myc, todos ellos, a su vez, "dedos" que se encargan de controlar muchos otros "interruptores". Este artículo está firmado por una antigua compañera de laboratorio (¡Felicidades, María José! ¡Todo un Nature Biotechnology!), y puede suponer una mejora en la calidad de vida de los pacientes, ya que si normalmente se requeriría una biopsia para conseguir células que luego serían transformadas, en el caso de los queratinocitos, bastaría con arrancar algunos pelos.
Reprogramación rápida de células tisulares
En el segundo, los autores (Jose Silva y colaboradores), persiguen también la generación de células pluripotentes, aunque en su caso a partir de neuronas. En el artículo investigan algunos de los problemas asociados a esta técnica llegando a la conclusión de que, en su modelo experimental, es suficiente con "tocar" los interruptores OCT4 y KLF4. Como podréis apreciar, la generación de células pluripotentes a partir de células adultas está siendo uno de los campos má activos, por los beneficios que se le supone, y la falta de "quejas" por "expertos" en bioética (aunque todo llegará).
Aprovecho para recomendar la sección "Syopsis" en la que se comentan artículos destacados para el público no especializado. En este caso, es Liza Gross la encargada de presentarnos estos trabajos.
Abuelita, abuelita, ¿por qué tienes la nariz tan poco eficiente? Para verte mejor
Hace ya más de un año, en No me chilles que no te huelo, hablábamos de lo mal que olemos. De lo mal que captamos los olores (mejor así). En ese caso el comentario giraba en torno de la relación "humedad"-capacidad olfativa, y del gen guci2d. Esta semana ha aparecido un artículo en el que también se estudia nuestro particular caso de mamífero "malos oledores". Sus conclusiones parecen relacionar la pérdida de capacidades olfativas con el desarrollo de la visión tricolor, con un dato curioso: el mono americano aullador, único mono del Nuevo Mundo con un limitado olfato, es también el único con visión tricolor. Curioso.
Imágenes: Wikimedia commons
19/10/08
Alus y exones: las increíbles frases saltantes
El paradigma central de la biología molecular está constituido por el flujo de información DNA --> RNA --> Proteína. Este es el mecanismo básico por el que funciona la totalidad de los seres vivos de nuestro planeta. El DNA, inamovible e intocable, sirve de molde para el RNA, que sale del núcleo y genera proteínas. Un gen, un RNA, una proteína. Al menos, así era al principio. Cada década de investigación añade alguna "varicación", alguna "actualización" al paradigma.
En la entrada de hoy pasaremos por algunas de estas actualizaciones que nos llevarán hasta las secuencias Alu y su papel sibarita en la evolución de los primates , por tanto, de nosotros mismos.
Exones o what really matters
Los genes no son tiras largas y continuas de información. El RNA copiado a partir de ellos sufre un "procesado" antes de salir del núcleo. Hay partes de los genes que se quedan en el núcleo (los intrones). La parte del RNA que sí se traducirá a proteína, los exones, son empalmados mediante el proceso conocido como splicing.
Se conocen ya muchas de las secuencias que dicen cuando empieza y acaba un exón. Son las señales de splicing, que les dicen a las proteínas que procesan el RNA por dónde deben cortar y pegar.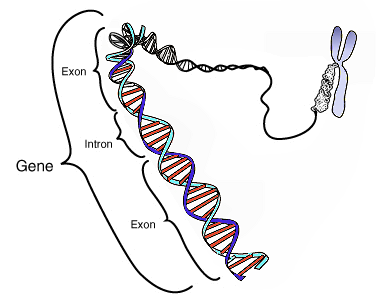
Ravidreams. Wikimedia commons
Forluvoft. Wikimedia commons
Splicing alterntaivo o variaciones sobre un mismo tema
Muchas veces los genes presentan "exones alternativos". La maquinaria de procesado del RNA puede "elegir" entre poner entre el exón 2 y 4, por ejemplo, el exón 3a o el 3b. El RNA resultante es diferente según qué exón se halla puesto (estas diferencias pueden ser sutiles o verdaderamente espectaculares). Así, un gen suele codificar para más de una versión de una proteína.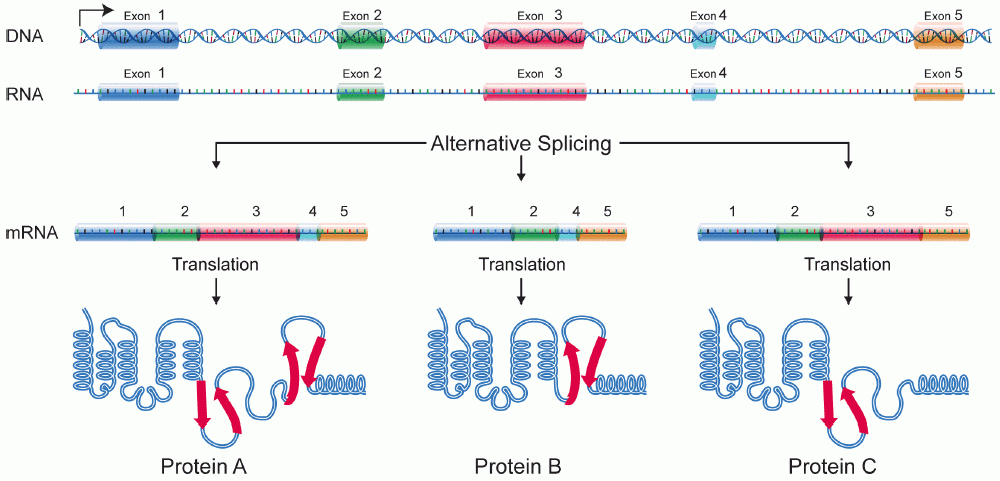
Hoffmeier. Wikimedia commons
Transposones o genes con hiperactividad
La visionaria premio Nobel de Medicina Barbara McClintock postuló la existencia de elementos móviles en el genoma, trozos de DNA que no saben quedarse en su sitio y van saltando de un lugar a otro. El postulado de McClintock gana en espectacularidad si se tiene en cuenta que fue publicado en la década de 1940, antes de saber, incluso, cómo era la estructura del DNA.
Estos elementos móviles reciben el nombre de transposones. Cuando un transposón se mueve puede insertarse en un lugar del DNA en el que no hay información relevante; puede insertarse dentro de un gen, cambiándolo totalmente; insertarse en las secuencias reguladoras, cambiando el dónde, cómo y cuándo se expresará el gen que regulan; a veces, cuando vuelven a saltar se llevan trozos de genes con ellos... unas secuencias muy simpáticas, como podéis apreciar.
Las secuencias Alu. Con nosotros desde que somos primates
Hace 65 millones de años se dio un proceso de transposición que acabó generando unas secuencias presentes en todos los primates, denominadas secuencias Alu. En los humanos hay más de un millón de copias de esta pequeña secuencia de 300 pbs (pares de bases, las famosas 4 letras del DNA). Imaginaos el cacao que puede representar tener un millón de pequeños "gamberros" moviéndose por el genoma.
Alu mejor tienen algo que ver con los exones
Hasta el 2002 se consideraba que las secuencias Alu sólo eran pequeñas secuencias capaces de fastidiarla disrumpiendo el funcionamiento "normal" de nuestro DNA. A partir de ese año (Gracias a trabajos como el de Sorek y compañía) las cosas empezaron a cambiar ya que se detectaron señales de splicing en estas secuencias.
Esto implicada que cuando una secuencia Alu se inserta en medio de un gen puede generar un exón, normalmente alternativo, que puede ser incorporado a determinadas versiones de la proteína, modificando, quizás, su funcionalidad. Así, los Alus dejaron de ser simples molestias, ya que parecía incluso que podrían haber jugado un papel relevante en la evolución de los primates.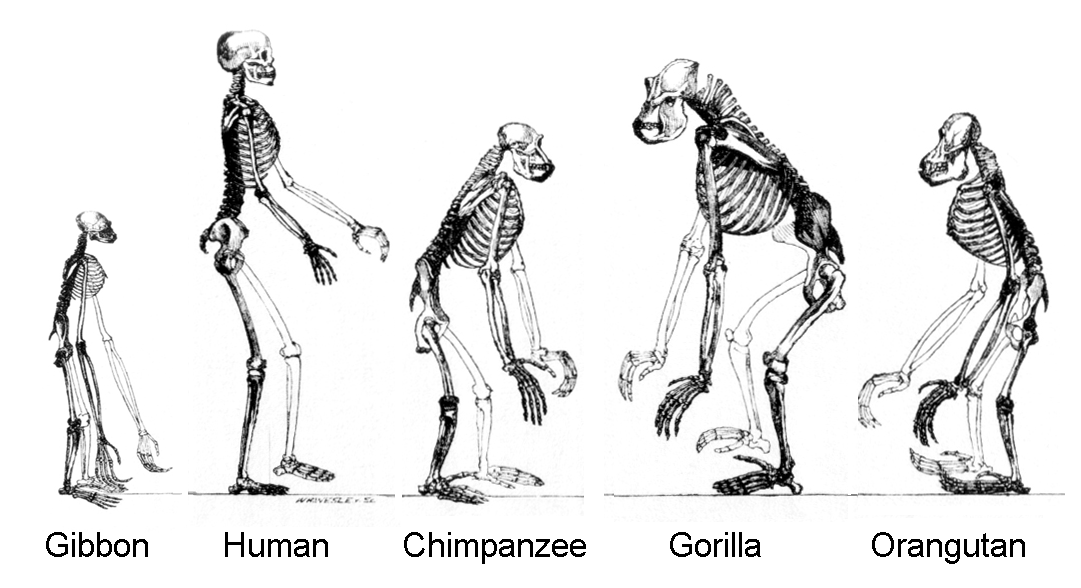
Wikimedia commons
El artículo que nos ocupa. Alus sibaritas
En un reciente artículo libre de PLoS, firmado por Lan Lin y colaboradores, se estudia precisamente este papel de los Alus como generadores de exones.
Lo primero que cabe destacar del artículo, investigación aparte, es que está escrito con un estilo alejado del estereotipo jeroglífico. Lo segundo, que está repleto de citas a otros artículos libres, lo que facilita la búsqueda de información. La ciencia se globaliza.
Los Alu-exones parecían ser exclusivos de formas minoritarias de las proteínas. Esto podría representar un mecanismo evolutivo de "protección" frente a los Alu-exones: si me entra un Alu-exón en un gen, puedo minimizar su impacto reduciendo la cantidad de RNA que lo contendrá.
Sin embargo, en este artículo, se estudió la posibilidad que los Alu-exones sean sibaritas y no les guste, por ejemplo, el hígado, expresándose, digamos, sólo en neuronas. Es decir, sean específicos de tejido. Y parece que en ciertos casos es así: los Alu-exones determinan la expresión de su "variante" en unos tejidos y no en otros, con lo que su papel en la evolución sería aún mayor de lo que se creía.
En el artículo se realizan, además, comparativas filogenéticas de cambios en las secuencias de Alu-exones y exones normales de diferentes primates, viendo que los que tienen su origen en Alu presentan una mayor tasa de mutaciones.
Para rematar esta información, estudian si los Alus de los que que derivan los Alu-exones son secuencias Alu-J (las más antiguas) o Alu-S (de "mediana edad"). Sus resultados indican que la mayoría de estos Alu-exones provienen de las Alu-J, es decir, de los Alus que más tiempo llevan entre los primates.
Quiero destacar que los dos últimos puntos de resultados se han realizado utilizando herramientas bioinformáticas al alcance de todos nosotros (Como el BLAST que utilizamos en la entrada Magnetocepción: azul eléctrico y azul magnético). Quizás en un futuro no muy lejano podamos publicar algún artículo por nuestra cuenta... mmm. ¿Alguien se apunta?

 Entradas


